
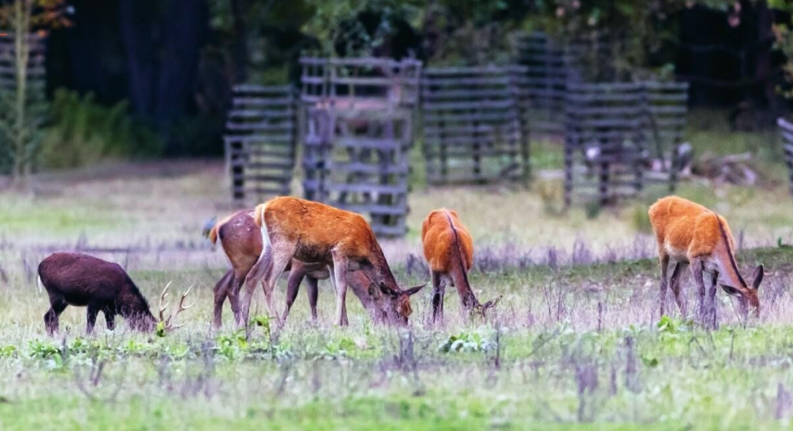
Ve třetím pokračování seriálu o novém pohledu na hybridizaci jelena siku a jelena evropského jsme popsali nejběžnější znaky hybridizace u zvěře vypadající spíše jako jelen evropský nebo jelen sika. Také jsme si řekli, že hybrid nemusí nést žádné spolehlivé znaky křížení. Co tedy potom?
METRICKÉ METODY
Když selže rozeznávání hybridů podle vnějších znaků a nejsou k dispozici postupy moderní genetiky, nastane problém. Zbývá se tedy případně vrátit k dnes již zastaralým postupům, jako jsou metrické metody – měření tělesných nebo lebečních rozměrů. Jako příklad si můžeme uvést postup, který se nám osvědčil koncem 70. let minulého století. Tehdy bylo zadání posoudit, zda jedna z trofejí, předložená na myslivecké výstavě, není hybridního původu. Použili jsme postup publikovaný Lowem a Gardinerem z Velké Británie v roce 1975 a proměřili 16 lebečních rozměrů u téměř 200 lebek obou druhů. Aplikovali jsme kanonickou diskriminační analýzu, jejímž cílem bylo najít co největší oddělení skupin údajů ze všech 16 lebečních rozměrů najednou a určit, které ze znaků přispívají k tomuto odlišení nejvyšší mírou. Výstup analýzy se dal potom ukázat v grafické podobě v prostoru definovaném kanonickými osami (graf). Řečeno jednoduchým způsobem: na obrázku pocházejícím z naší tehdejší publikace jsou zřejmé dva shluky údajů. Ten výše položený znázorňuje údaje pro jelena evropského, ten níže položený pro siku. Náš, bohužel již zesnulý spolupracovník, dr. Jaromír Hyanek, matematik a statistik, vymyslel výpočet elips spolehlivosti. Údaje od jedinců uvnitř elipsy odpovídají standardu druhu. Údaje mezi oběma elipsami spadají mezi hybridy. Takže podezřelá trofej byl typický F1 hybrid a kromě něj jsme odhalili ještě tucet dalších. K čemu popsaná metoda může dnes vůbec ještě sloužit? Mohla by najít uplatnění tam, kde byla původně použita, tedy když vyvstane problém s posuzováním sporných trofejí. Její nevýhodou však je, že se musí posuzovat trofej v rámci celé populace, z níž je nutné proměřit co největší množství kusů. Vychází z toho, že se matematicky hledají hodnoty, které vybočují z normálu obou druhů, a proto zachytí pouze hybridy F1 typu nebo jim podobné. Dalším hendikepem je, že metoda není natolik jednoduchá a bezpracná, aby se mohla stát běžným prostředkem třeba pro hodnotitelské komise.
Mohli bychom ještě zmínit celou řadu podobných pomocných metod, ale všechny mají společného jmenovatele: nejsou zcela spolehlivé a vždy je nutné hodnotit celou populaci, nikoliv jen jednotlivé kusy. Hodilo by se také mít k tomu k dispozici nějakou spolehlivější metodu určování věku, než je metoda vrstev dentinu na řezu molárů, o naprosto nespolehlivém odhadu podle obrusu zubů ani nemluvě. Celkově lze ale konstatovat, že tyto metody dnes patří v podstatě už jen historii. Řečeno na rovinu, kromě očividných fenotypových znaků hybridizace nemáme k dispozici žádnou metodu, která by se dala uplatnit v běžné praxi.
GENETICKÉ METODY
– STARÝ DOBRÝ KARYOTYP
Slovo „genetika“ má mezi myslivci až jakýsi mystický zvuk. To je dáno především tím, že znalost genetiky coby disciplíny je mezi myslivci historicky poměrně mělká. Je lidské, že čím méně o něčem víme, tím více a rádi o tom diskutujeme. Proto se provádí např. selektivní lov, aby se „zlepšila genetika populace“, ač je to nesmysl. A tak podobně. Všude tam, kde si s něčím nevíme rady, předpokládáme, že v tom musí být genetika, aniž bychom tušili, zda to je či není možné. A proto také panuje mezi myslivci neochvějná důvěra v to, že „genetika“ hybridy prostě pozná.
Ale vraťme se k tématu. Ve zmíněných 70. letech, kdy jsme se zabývali hybridizací u nás, se teprve zkoumal především karyotyp, tedy soubor chromozomů v jádru buněk. (Přičemž chromozom je vlastní nositel genetické informace a skládá se z DNA a bílkovinných složek.)
Z hlediska daného tématu šlo tehdy především o počet chromozomů. Chromozomy se řadí do dvojic podle struktury a uvádí se počtem „2n“. Je to z toho důvodu, že jednu sadu chromozomů má savčí jedinec po otci, druhou po matce. Z toho vyplývá, že „normální“ druh by měl mít sudý počet chromozomů. Různé druhy mají různý počet chromozomů.
Např. jelen evropský má 2n=68, zatímco jelen sika 2n=66. V rané fázi zkoumání se mělo obecně za to, že různý počet chromozomů je zásadní překážkou pro mezidruhové křížení. To se však ukázalo jako mylné, a tak se nám podařilo zachytit jednu laň a jednoho jelena z obory Janovice u Heřmanova Městce, kteří měli každý lichý počet chromozomů, tedy 2n=67, publikováno v roce 1981. V té době by se lepší důkaz hybridizace asi těžko hledal.
O 20 a více let později se ale s rozvojem obecné a molekulární genetiky začaly prosazovat úplně nové metody genetického určení hybridů.
VĚDA A VÝZKUM
REVOLUCE S PŘÍCHODEM MOLEKULÁRNÍ GENETIKY
Nebudeme se tady ale pouštět do kdovíjakých detailů a zůstaneme jen u toho nejjednoduššího, co potřebujeme k dalšímu popisu.
Koncem 90. let se do genetického zkoumání hybridizace pustil kromě jiných také tým dnešní prof. Josephine Pembertonové, Angličanky působící na univerzitě ve skotském Edinburghu. Naskytla se jim totiž ideální příležitost zkoumat populaci „v pohybu“. Na západ od Glasgow a jižně od centra oblasti Argyll vybíhá z pevniny do moře poloostrov Kintyre. Tam začal do populace siky, založené v 19. století, teprve nedávno pronikat jelen evropský, což přineslo unikátní možnost sledovat prolínání obou druhů do sebe. Aby to nevypadalo vědecky, říká se tomu introgrese. První analýza týmu prof. Pembertonové přinesla dost znepokojivé poznatky: stupeň introgrese mezi oběma druhy jelenů byl 30 až 40 %, sika zvyšoval svůj podíl v populaci přibližně o 9 % za rok a posouval se za stejnou dobu skoro o 4 km (Goodman a kol. 1999). To ale nebylo všechno. Pokrok se nezastavil a s rozvojem genetické metodologie se personálně pozměněný tým prof. Pembertonové pustil přibližně o 20 let později do upřesnění původních výsledků. A ejhle, z někdejších siků a jelenů evropských, v úvodní analýze, určených jako čistých, bylo seznáno u 26 % z nich, že jsou ve skutečnosti hybridi (McFarlane a kol. 2020)!
V čem byl základní rozdíl v metodice? V úvodní studii byly použity nejdříve pouze tři, později 11 mikrosatelitních lokusů, zatímco v té novější studii bylo použito již 22 lokusů. Zkusíme si to vysvětlit. „Mikrosatelit“ je označení pro opakující se sekvence DNA, které se vyskytují před určitým lokusem a za ním. (Omlouvám se za poněkud agramatickou formu psaní a skloňování slova „lokus“, ale kdysi se na podobě, kterou zde používám, shodla česká genetická společnost, i když to případné latináře nepochybně tahá za uši.) Lokus je genetický termín, označující pozici na chromozomu, kterou zaujímá jeden či více genů. Nebyly to všechny proměnné v metodice, ale pro náš účel to zatím postačí.
Co nám tyto rozdílné výsledky vlastně říkají? Za prvé, že zpřesnění a zvýšení citlivosti použité genetické metody zvyšuje podíl doložených hybridů v populaci, nikoli naopak. Tedy že k hybridizaci došlo vícekrát, než jsme se původně domnívali. Za druhé, že žádné výsledky nemůžeme brát jako definitivní a při zobecňování výsledků jakýchkoliv genetických studií musíme být velmi obezřetní a hodnotit jednotlivé studie podle zvolené metody. To platí především pro ty studie, které nezaznamenaly dosud žádný výskyt hybridizace!
PŘÍČINY NEPŘESNOSTÍ
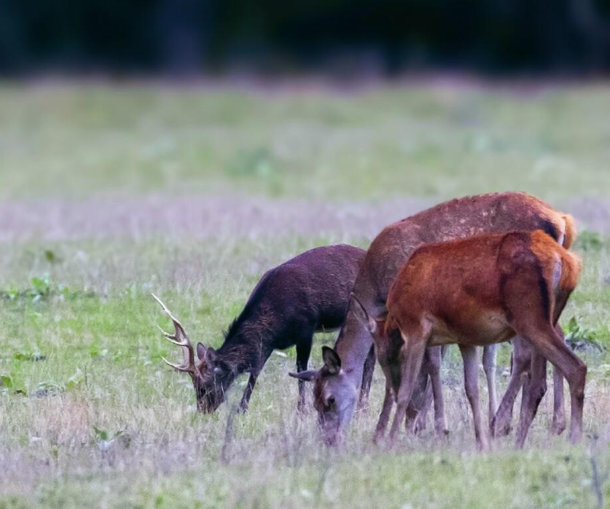
Sami autoři asi do dosud publikovaných genetických studií, zaměřených na křížení jelena siky s jelenem evropským, připouštějí celou řadu problémů při použití tohoto typu genetické metodologie. V první řadě je to malý počet použitých lokusů. I při použití 22 lokusů nedokáže totiž zatím analýza prokázat hybridizaci po třech až čtyřech generacích od jejího vzniku. To významně znepokojuje rozlišení kříženců po zpětném křížení na jeden či druhý druh. Zpětné křížení znamená, že když vznikne kříženec, tak pokud se nesetká a nekříží s jiným takovým křížencem, množí se s jedním či druhým čistým druhem, nejčastěji tím od matky, protože v její blízkosti vyrůstá. Tedy s čistým druhem, takže se jaksi „pročišťuje“ směrem k tomuto druhu. Zpětné křížení je přitom nepochybně zcela běžný proces související s hybridizací.
V publikovaných studiích bylo použito 3, 4, 9, 11, 13, 14 a 22 lokusů. V poslední zveřejněné studii, zabývající se hybridizací v Česku, bylo použito 11 lokusů (Putnová a kol. 2021). Není divu, že v oblastech, kde tito autoři neprokázali žádného hybrida, Mgr. Jarmila Prokešová-Krojerová, Ph.D., v současnosti pravděpodobně nejkvalifikovanější expertka v této oblasti, která používá 22 lokusů, křížence potvrdila, ale zatím to nepublikovala. To ale není kritika týmu MVDr. Ivety Putnové, Ph.D.! Naopak, čím více laboratoří se bude hybridizaci věnovat, tím lépe! Jen se zde snažíme přijít na kloub rozdílnosti výsledků.
Dalším velmi podstatným problémem je, že některé zkoumané populace prokázaly obecně nízkou heterozygotnost, tedy zjednodušeně nízkou genetickou variabilitu. Nízká heterozygotnost totiž znesnadňuje rozpoznavatelnost kříženců. Nízkou heterozygotnost lze očekávat zejména v uzavřených populacích, tedy v oborách a na farmách, kde se na potomstvu podílí v každé sezoně jen několik otců. U našich jelenů v Uhříněvsi, u kterých máme rodičovské zkoušky každého koloucha, kupříkladu víme, že přibližně před 25 lety, kdy jsme s těmito zkouškami začínali, se podílel dva roky po sobě u 19 a další rok u 26 laní na všech kolouších pouze jeden jelen z 13, resp. 18 přítomných jelenů. Stádo je uzavřené po skoro 40 let, takže heterozygotnost je skutečně nepatrná. Dokonce je až tak nízká, že začíná být stále obtížnější určovat spolehlivě rodiče kolouchů. Nízká heterozygotnost bude vysoce pravděpodobnou příčinou, proč vzdor nejvyššímu počtu lokusů v použité analýze nebyla v tomto stádu hybridizace geneticky prokázána už po dvou generacích, ačkoliv k ní došlo za kontrolovaných a prokázánych podmínek. Obdobou k situaci v našem chovu můžeme najít zejména v oborních chovech, kde se také může prosazovat jen několika jelenů v populaci na úkor jiných. Protože kvůli oplocení nemůže docházet k přirozenému mísení různých populací jako ve volnosti, snižování heterozygotnosti je pak nevyhnutelný proces. K tomu můžeme připočítat tradiční selektivní lov zejména samčí části populace. Jak známo, jakákoliv selekce vede ke snižování genetické variability. Můžeme proto očekávat slabší nálezy hybridizace v oborních chovech ve srovnání s volně žijícími populacemi, přestože výskyt hybridizace ve smíšených oborních chovech bude z logiky věci pravděpodobně vyšší než ve volnosti.
ZÁHADA NA KONEC
A ještě zbývá vysvětlení poslední záhady v dané souvislosti. Existují oborní chovy, kde můžeme vidět spoustu kusů obou druhů – jelena siky a jelena evropského, nesoucích jasné znaky hybridizace ve zbarvení a v morfologických znacích, např. výraznou skvrnitost u jedinců vypadajících spíše jako jelen evropský, ale dosavadní genetické testy neprokázaly hybridizaci. Nejjednodušší vysvětlení je, že hybridizace, k níž došlo kdysi dávno – rozuměj před třemi, čtyřmi generacemi a dříve, mohla zanechat fenotypové stopy, které genetické markery už nedokážou detekovat. Existují samozřejmě ještě složitější možnosti, jako je mitochondriální introgrese, při níž mitochondriální DNA jednoho druhu může přetrvávat u jedinců, kteří jsou jinak už geneticky čistí. Nebo připadá v úvahu selektivní výhoda, při které introgresivní znaky mohou přetrvávat díky svým adaptivním výhodám (tzn. výhodám, jež podporují přežití jedince a jeho další reprodukci) atd. Do toho se ale v tomto článku již pouštět nebudeme. Prostě je možné, aby různí jedinci nesli znaky předchozí hybridizace, a genetická analýza předchozí křížení prokázat nedokáže.
K tomu jen připomínám, že od introdukce jelena siky do populací jelena evropského v našich zemích uběhlo řádově 50 generací, v jejichž průběhu mohlo ke křížení docházet…
Literatura, z níž byly čerpány informace pro přípravu tohoto článku, je uložena u autora.
Autor:
prof. Ing. Luděk Bartoš, DrSc.
Oddělení etologie Výzkumného ústavu živočišné výroby v Praze-Uhříněvsi (s podporou MZE-RO0723) a Katedra myslivosti a lesnické zoologie Fakulty lesnické a dřevařské České zemědělské univerzity v Praze
